13 Epidemiemodelle
Unter einer Epidemie (aus dem Griechischen für "`im Volk verbreitend"`) versteht man ein stark gehäuftes örtlich und zeitlich begrenztes Vorkommen einer Erkrankung, insbesondere von Infektionskrankheiten. Bei einer Ausbreitung über mehrere Länder und Kontinente spricht man von einer Pandemie.
Mathematische Epidemiemodelle beschreiben die Dynamik und Ausbreitung von Epidemien. Sie liefern ein Verständnis der Auswirkungen krankheitsspezifischer Eigenschaften auf den Epidemieverlauf, wie z.B. die Auswirkung der Länge der Inkubationszeit. Die Inkubationszeit, ist die Zeitspanne zwischen der Infektion (Eindringen des Erregers in den Körper) bis zum Auftreten der ersten Symptome (bei Masern 8-14 Tage). Die Inkubationszeit ist zu unterscheiden von der Latenzzeit, Zeitspanne zwischen den Eindringen des Erregers und dem Beginn der Infektiosität. Fast alle modernen Epidemiemodelle, die die Ausbreitung z.B. von HIV (AIDS) oder SARS-CoV-2 (COVID-19) beschreiben, gehen letztlich auf das klassische Epidemiemodell von (Kermack und McKendrick 1927) zurück.
Historische Meilensteine der Epidemiologie
Hippokrates 459 - ca. 370 v. Chr.: Begründer der wissenschaftlichen Medizin, erste Aufzeichnungen von Krankheitsverläufen
Louis Pasteur 1822-1895: Begründer der Mikrobiologie, Entwicklung der Schutzimpfungen gegen Hühnercholera, Milzbrand und Tollwut
Robert Koch 1843 - 1910: Infektionslehre, Tropenmedizin und Epidemiologie
19. Jahrhundert: Aufzeichnung von Krankheitsverläufen und Erklärungsversuche von Epidemien (Cholera, Typhus, Pocken)
Ende des 19 Jahrhundert: erste Modelle
Kermack & McKendrick (1927): Klassisches Epidemiemodell (SIR), Schwellenwertsatz der Epidemiologie
Wichtige Faktoren bei der Modellierung von Epidemien
Übertragungswege Zwischenwirte, Blutkontakt, Tröpfcheninfektion
Immunität durch Erkrankung, durch Impfung
Latenzzeit und Inkubationszeit
Krankheitsverlauf, Dauer, Letalität, bei Kindern/Erwachsenen
Populationsstruktur, Dichte, Verteilung
Reaktion auf Fallzahlen, Schulschließungen, Impfungen, Quarantäne, Verhaltensänderungen
Statistische Kenngrößen von Epidemien
relative Prävalenz: Anteil der Infizierten/Erkrankten an der Gesamtbevölkerung
absolute Prävalenz: Anzahl der Infizierten/Erkrankten
relative Inzidenz: Anteil der Neuinfizierten/Neuerkrankten an der Gesamtbevölkerung in einem bestimmten Zeitraum
absolute Inzidenz: Anzahl der Neuinfizierten/Neuerkrankten an der Gesamtbevölkerung in einem bestimmten Zeitraum
kumulative Inzidenz: Gesamtzahl der Neuinfizierten/Neuerkrankten bis zu einem bestimmten Zeitpunkt
13.1 Das Epidemiemodell nach Kermack & McKendrick
Es wird eine Bevölkerung mit einer konstanten Größe \(N\) zugrunde gelegt. In dieser Bevölkerung seien alle Personen für die modellierte Krankheit gleich anfällig. Die Übertragung der Krankheit findet durch den Kontakt einer infizierten Person \(I\) (engl. infectious) mit einer anfälligen Person \(S\) ( engl. susceptible) statt. Eine Person, die infiziert wurde, gesundet nach einer gewissen Zeit \(R\) (engl. removed, recovered). Es wird hierbei nicht zwischen infizierten und erkrankten Personen unterschieden und gesundete Personen sind immun und werden nicht wieder anfällig. Aus den englischen Bezeichnungen leitet sich der Name SIR-Modell ab:
\(S(t)\) Anzahl der anfälligen Personen zur Zeit t,
\(I(t)\) Anzahl der infizierten Personen zur Zeit t und
\(R(t)\) Anzahl der gesundeten Personen zur Zeit t
Man nimmt an, dass zu Beginn einer Epidemie eine sehr kleine Anzahl von Personen infiziert ist: \(I(0) << N\) und die restlichen Personen anfällig sind \(S(0)=N-I(0)\), \(R(0)=0\).
Wird eine Infektion durch den Kontakt eines Anfälligen mit einem Infizierten hervorgerufen, so ist das Infektionsrisiko eines Anfälligen umso größer, je mehr Infizierte in der Bevölkerung sind. Die Infektionsrate wird mit dem Anteil der Infizierten I an der Gesamtbevölkerung N steigen:
Der Parameter \(\beta\) (1/Zeit) gibt die die maximale Infektionsrate an. Sie hängt von der Zahl der Kontakte pro Zeiteinheit k ab, die eine suszeptible Person hat, und der Wahrscheinlichkeit p, dass ein Kontakt zur Infektion führt:
Die Änderung der Zahl der Suszeptiblen hängt von der Zahl der Neuinfektionen ab, die Änderung der Zahl der Infizierten hängt zusätzlich von der Zahl derer ab, die Gesunden. Geht man von einer konstanten Gesundungsrate \(\gamma\) (in 1 pro Zeit) aus, so erhält man das SIR-Modell nach (Kermack und McKendrick 1927):
Führt man zusätzlich den Parameter \(\rho=\frac{\gamma}{\beta} \cdot N\) ein, so kann man alternativ für die Änderung der Infizierten auch \(\dot I = \beta \cdot \frac{I}{N} (S -\rho)\) schreiben.
13.1.1 SI-Modell
Für eine konstante Bevölkerungsgröße gilt zu jeder Zeit \(S+I+R=N\). Damit lässt sich das System 13.1 auf die ersten beiden Gleichungen reduzieren, da die Anzahl der immunen Personen R aus der Anzahl der suszeptiblen und der infizierten berechnet werden kann. Bei konstanter Bevölkerungsgröße N reicht es also, das folgende Modell (SI-Modell) zu untersuchen:
Diesem System sieht man den Epidemieverlauf bereits an. Für \(S>\rho\) gilt \(\dot I>0\), für \(S<\rho\) gilt \(\dot I<0\). Dass bedeutet, dass die Epidemie ausbrechen kann, wenn die Anzahl der Anfälligen oberhalb des Schwellenwerts \(\rho\) liegt. Anderenfalls ebbt sie ab. Das Systemverhalten ist in Abbildung 13.1 dargestellt.
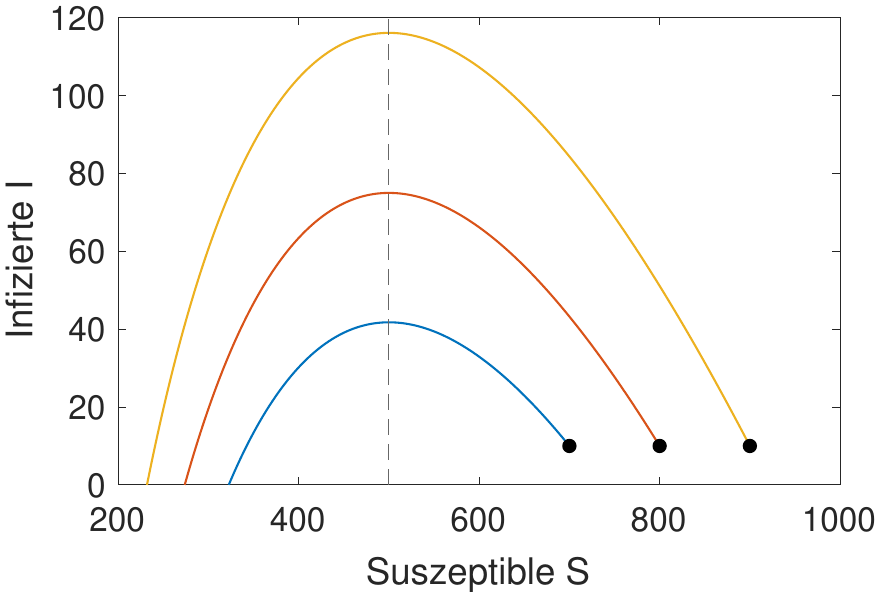
Die Fixpunkte des SI-Modells sind alle Punkte \((S^*,I^*)=(S,0), S\ge0\). Damit besteht die gesamte S-Achse aus Fixpunkten.
Die S-Isokline, also das Teilgleichgewicht, bei dem sich die Zahl der Suszeptiblen nicht mehr ändert, ist dadurch charakterisiert, das entweder keine Infizierten oder keine Suszeptiblen da sind. Es liegt folglich auf den Achsen. Die Lösungskurven verlaufen im S-I-Phasenraum auf den Achsen senkrecht.
Die I-Isokline, also das Teilgleichgewicht, bei dem sich die Zahl der Infizierten nicht mehr ändert, ist dadurch charakterisiert, das entweder keine Suszeptiblen mehr da sind oder die Zahl der Suszeptiblen den Schwellenwert \(\rho\) angenommen hat. Es liegt folglich auf der S-Achse und der senkrechten Linie bei \(S=\rho\). Die Lösungskurven verlaufen im S-I-Phasenraum waagerecht.
Da die gesamte S-Achse aus Fixpunkten besteht, kann keine asymptotische Stabilität erwartet werden. Es kann mit den Methoden nach Anhang I gezeigt werden, dass für \(S>\rho\) jeder Fixpunkt \((S,0)\) instabil ist, die Epidemie bricht aus. Für \(S<\rho\) ist \((S,0)\) marginal stabil, die Infizierten verschwinden (I.4.2 ).
13.1.2 Basisreproduktionszahl
Die Basisreproduktionszahl \(R_0\) gibt an, wie viele Menschen von einer infektiösen Person durchschnittlich angesteckt werden, wenn die gesamte Population suszeptibel ist. Die Basisreproduktionszahl ist also die durchschnittliche Anzahl infektiöser Kontakte eines Infizierten während seiner infektiösen Periode. Sie ist das Produkt aus der mittleren Anzahl der Kontakte k einer infizierten mit einer suszeptiblen Person, der Wahrscheinlichkeit p, dass dieser Kontakt zur Ansteckung führt und der mittleren Dauer der infektiösen Periode \(\frac{1}{\gamma}\) (siehe 13.1.3).
Die mittlere Dauer der infektiösen Periode ist der Kehrwert der Genesungsrate. Pro Zeitintervall infiziert eine infektiöse Person also \(p\cdot k\) weitere Personen und dies geschieht im Mittel in der Zeit \(\frac{1}{\gamma}\). Die Basisreproduktionszahl ist eine dimensionslose Größe.
Eine Epidemie kann beendet werden, wenn die Anzahl fataler Kontakte eines Infizierten \(\beta= p\cdot k\) unter den Wert \(\gamma\) gesenkt werden kann, also die Basisreproduktionszahl \(R_0=\frac{p\cdot k}{\gamma}=\frac{\beta}{\gamma} <1\) wird. Dies kann man verstehen, wenn man
betrachtet und berücksichtigt, dass zu Beginn einer Epidemie fast alle Personen suszeptibel sind (\(S\approx N\)), dann gilt näherungsweise:
Die Epidemie ebbt also für \(\beta<\gamma\) oder \(R_0= \frac{\beta}{\gamma} <1\) ab.
Die Senkung der Basisreproduktionszahl kann durch Verringerung der fatalen Kontakte, Verkürzung der infektiösen Periode (Kehrwert von \(\gamma\)) und durch Impfung erreicht werden.
13.1.3 Mittleren Dauer der infektiösen Periode
Sei \(I_0\) die Anzahl der infizierten zur Zeit 0. Von diesen sind zum Zeitpunkt t noch
infiziert. Bis zum Zeitpunkt t ist von den anfangs \(I_0\) Infizierten der Anteil
nicht mehr infiziert. F(t) ist die Verteilungsfunktion der Zeit bis zur Genesung. Die zugehörige Dichtefunktion lautet:
Die mittlere Dauer der infektiösen Periode E(t) (Erwartungswert) beträgt
13.1.4 Bestimmung der Basisreproduktionszahl aus der finalen Suszeptiblenzahl
Für das klassische Epidemiemodell gilt
Daraus folgt durch Integration
Mit \(I(S_0)=I_0\) erhält man die Konstante
Nach Abklingen der Epidemie (\(I_0\)) bleibt die Zahl \(S_\infty\) an Suszeptiblen übrig, also gilt \(I(S_\infty )=0\):
mit \(I_0+S_0=N\) gilt
Daraus folgt für die Basisreproduktionszahl1
Nimmt man an, dass zu Beginn der Epidemie \(S_0 \approx N\) gilt folgt
Schwellenwertsatz der Epidemiologie
Ist im SIR-Modell die Anzahl der Anfälligen zu Beginn der Epidemie \(S(0)=\rho + \varepsilon\) für ein \(\varepsilon>0\) und die Anzahl der Infizierten sehr viel kleiner als die Anzahl der Anfälligen \(I(0)<<S(0)\), so werden schließlich ca. \(2\; \varepsilon\) Personen erkranken.
Es muss also gezeigt werden, dass nach Abklingen der Epidemie, wenn also \(\dot R=0\) ist, \(R^*\approx 2\; \varepsilon\) gilt. Aus \(\dot R = \gamma \cdot I\) folgt \(I=\frac{1}{\gamma} \cdot \dot R\). Damit gilt
Eine Integration auf beiden Seiten führt zu
Mit \(R(0)=0\) gilt
Diese Gleichung kann man nun in die dritte Gleichung einsetzen und erhält
eine Gleichung, in der nur noch die Zustandsvariable \(R\) vorkommt. Diese Gleichung ist zwar nicht explizit lösbar, kann aber durch eine Taylorentwicklung für
\(f(R) = e^{-\frac{1}{\rho}\cdot R}\) an der Stelle \(R=0\) approximiert werden:
Man erhält mit \(N=S_0+I_0\)
Für die Anfangswerte \(S_0=\rho+\varepsilon\) mit \(\varepsilon<<\rho\) und \(I_0<<\varepsilon\) gilt
Es gilt \(\dot R=0\) für \(R^*=0\) (vor Beginn der Epidemie) und
nach Abklingen der Epidemie. Hierbei handelt es sich um eine Approximation. Diese unterschätzt den tatsächlichen Epidemieverlauf etwas.
13.2 Vergleich von Räuber-Beute-Modell und Epidemiemodell
In Abschnitt 5.1 haben wird das Lotka Volterra Modell als einfaches Räuber-Beute-Modell kennen gelernt. Das Modell ist dem Epidemiemodell recht ähnlich, sofern eine konstante Bevölkerungsgröße N angenommen wird und dadurch die Gleichung für R redundant ist:
Bringt man beide Modell in eine ähnliche Notation, sieht man die Übereinstimmung noch besser. Hierbei sei nun x die Zahl der Suszeptiblen resp. der Beute und y die Zahl der Infektiösen, resp. der Räuber. Die Parameter werden nun \(p_1\), \(p_2\) und \(p_3\) genannt, wobei wir im SIR-Modell für eine konstante Populationsgrösse \(\frac{\beta}{N}\) zum Parameter \(p_2\) zusammenfassen:
Die Ergebnisse der Modelle sind in Abbildung 13.2 dargestellt. Man erkennt, dass beim SI-Modell das Verschwinden der Epidemie eine Folge zu geringer Suszeptiblenzahlen ist. Beim Lotka-Volterra-Modell liefert der zusätzliche Wachstumsterm der Beute den Nachschub an Beute, so dass es zu den typischen geschlossenen Bahnen kommt.
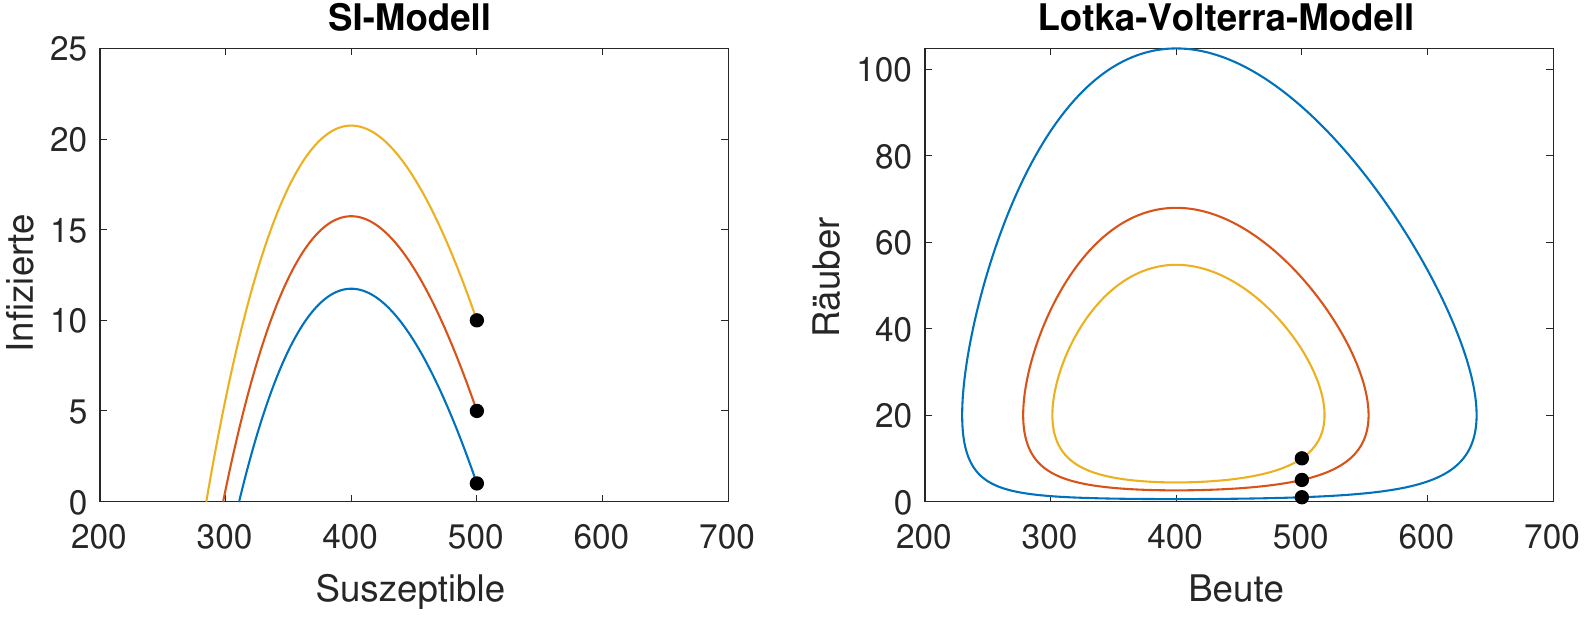
Parametrisierung: \(p_1=0.02\), \(p_2=0.001\), \(p_3=0.4\), \(x_0=500\), \(y_0 \in \{1,5,10\}\).
13.3 Das SIS-Modell
Eine modifizierte Version des SIR-Modells ist das SIS-Modell, bei dem angenommen wird, dass gesundete Personen direkt wieder anfällig werden:
Unter der Annahme einer konstanten Bevölkerungsgröße N gilt S+I=N für alle Zeiten und das System kann auf eine Gleichung reduziert werden:
Die stationären Zustände sind durch \(I_0^*=0\) und \(I^*=N\cdot(1-\frac{\gamma}{\beta})\) gegeben. Die Epidemie kann innerhalb der Bevölkerung endemisch persistieren, wenn der nichttriviale stationäre Zustand stabil ist. Es gilt
Der Zustand \(I^*\) ist also für \(\gamma -\beta<0\) stabil oder anders ausgedrückt für die Basisreproduktionszahl \(R_0=\frac{\beta}{\gamma}>1\).
\(R_0=\frac{k}{\gamma}\) mit \(\beta=p \cdot \frac{k}{N}\) und \(p=1\)↩︎